Che cos'è un rinoceronte lanoso?
Il rinoceronte lanoso (nome scientifico: Coelodonta antiquitatis) era un rinoceronte massiccio e adattato al freddo che popolò l'Eurasia settentrionale per oltre 400.000 anni, attraverso una successione di cicli glaciali, prima di estinguersi circa 14.000 anni fa. Era il secondo mammifero terrestre più grande della steppa dei mammut dopo il mammut lanoso, e il corno di rinoceronte più lungo mai registrato appartiene a questa specie. I suoi crani sono tra gli oggetti più straordinari che emergono dal permafrost siberiano.
Un rinoceronte costruito per l'era glaciale
Immaginate la steppa dei mammut al culmine dell'ultima glaciazione: una prateria secca e priva di alberi che si estendeva dalla costa atlantica dell'Europa fino al Mare di Bering — il braccio più settentrionale del Pacifico, tra la Siberia nord-orientale e l'Alaska — con inverni freddi e limpidi, un manto nevoso sottile e un terreno compatto. Questo paesaggio sosteneva un peso straordinario di grandi erbivori — mammut, bisonte delle steppe, cavallo selvatico, renna, antilope saiga — e fra loro si muoveva un animale che, da lontano, sembrava un grande masso scuro e basso che avanzava lentamente sull'erba.
Il rinoceronte lanoso raggiungeva un'altezza al garrese di circa 1,45–1,60 m (all'incirca 4 ft 9 in – 5 ft 3 in), misurava 3,2–3,6 m dalla testa alla coda (10,5–11,8 ft) e pesava nell'ordine di 1,5–2 tonnellate (3.300–4.400 lb), con alcune stime che collocano gli esemplari più grandi ancora più in alto. La massa era dunque paragonabile a quella dell'odierno rinoceronte bianco, ma le proporzioni erano assai diverse: il rinoceronte lanoso aveva un corpo più lungo e zampe nettamente più corte. La testa era portata bassa e protesa in avanti, sostenuta da potenti muscoli ancorati a un occipite lungo e inclinato.
Quasi ogni tratto dell'animale era una risposta al freddo. Un fitto sottopelo lanoso si trovava sotto lunghe giarre ruvide, più spesse su collo e garrese, mentre gli arti portavano un pelo corto che impediva a neve e ghiaccio di aderire e ostacolare il movimento. La pelle era spessa da 5 a 15 mm (0,2–0,6 in), più sottile ai lati della testa e più robusta su petto, dorso e posteriore, con al di sotto uno strato di grasso sottocutaneo. Le orecchie raggiungevano appena 18,5–24 cm (7,3–9,4 in), contro i 25–30 cm (9,8–11,8 in) di una femmina di rinoceronte bianco, e la coda misurava circa 50 cm (19,7 in) anziché i 70–75 cm (27,6–29,5 in) tipici dei rinoceronti attuali. Estremità accorciate di questo tipo ricorrono di continuo nei mammiferi dei climi freddi, e il mammut lanoso mostra lo stesso schema.
Una questione a lungo aperta è stata risolta solo di recente. Gli artisti paleolitici raffiguravano costantemente il rinoceronte lanoso con una gobba pronunciata sopra le spalle, ma nessun esemplare mummificato l'aveva mai mostrata, e la gobba era largamente considerata una licenza artistica. Poi, nel 2020, sulla riva del fiume Tirekhtyakh in Jacuzia fu recuperata la mummia di un animale di quattro anni con la gobba chiaramente presente — un deposito adiposo lungo circa 40 cm (15,7 in), collocato tra la nuca e la sommità delle scapole. Gli artisti avevano visto giusto.
Fuori dal Tibet
Il rinoceronte lanoso non acquisì i suoi adattamenti al freddo perché arrivò l'era glaciale. Li portava già con sé.
Nel 2007, nel bacino di Zanda, nel Tibet sud-occidentale, furono recuperati un cranio completo e una mandibola, descritti come una nuova specie, Coelodonta thibetana, datata a circa 3,7 milioni di anni fa — ben prima dell'inizio delle glaciazioni pleistoceniche. Questo animale mostrava già il corno nasale appiattito e il cranio basso, adattato al pascolo, dei suoi parenti successivi. Ne nacque l'ipotesi «Out of Tibet»: gli inverni freddi dell'altopiano avrebbero fatto da terreno di addestramento per una serie di grandi erbivori dell'era glaciale, preadattati e pronti a espandersi in Eurasia non appena il clima si fosse raffreddato.
Il genere si diffuse in Siberia, Mongolia e Cina durante il Pleistocene inferiore. Coelodonta antiquitatis compare per la prima volta in Cina all'inizio del Pleistocene medio, e i più antichi resti europei della specie risalgono a circa 450.000 anni fa. Il genere raggiunse l'Europa ancora prima: un cranio di Coelodonta proveniente da Bad Frankenhausen, in Germania, viene da depositi di fase fredda vecchi di circa 460.000 anni. Nel corso di questa linea evolutiva il cranio divenne progressivamente più lungo, più stretto e più inclinato, le file dentarie si spostarono e lo smalto e il cemento si ispessirono. Ognuno di questi cambiamenti rese l'animale un pascolatore migliore.
Il suo parente vivente più prossimo, sulla base dei dati genomici, è il rinoceronte di Sumatra, dal quale i suoi antenati si separarono circa 9,4 milioni di anni fa.
Dove vivevano
Nel corso di queste centinaia di millenni il suo areale, nella massima estensione, formava un'ampia fascia dalla Spagna settentrionale e dalla Gran Bretagna a ovest, attraverso l'Europa centrale e orientale, fino alla Siberia nord-orientale, alla Cina settentrionale e alla Mongolia. Nessun'altra specie di rinoceronte, vivente o estinta, ha mai occupato tanto territorio.
Era però esigente riguardo a dove stabilirsi. Prediligeva pianure, altipiani e valli fluviali dal clima secco, con terreno compatto e neve scarsa, ed era assente dall'Irlanda, da gran parte dell'Europa meridionale, dalla Scandinavia settentrionale, dalla penisola del Tajmyr e dalle isole giapponesi. Il dato più eloquente è che non passò mai in Nord America — pur essendo presente nella penisola dei Ciukci e sull'isola di Wrangel, a poche centinaia di chilometri dal ponte di terra di Bering, per decine di migliaia di anni in cui quel ponte emergeva sopra il livello del mare. La spiegazione più probabile è che il ponte fosse troppo umido e paludoso per un animale dalle zampe corte e dal corpo pesante, privo di zoccoli espansi o cuscinetti plantari. Mammut lanoso, leone delle caverne, bue muschiato e bisonte delle steppe compirono tutti la traversata. Il rinoceronte no.
Corna che nessun rinoceronte vivente possiede
Il corno di rinoceronte non ha un nucleo osseo. È un derivato cutaneo, formato da filamenti di cheratina immersi in una matrice di cheratina e fissato alle ossa nasali e frontali da tessuto connettivo e legamenti — per natura più affine a uno zoccolo o a un'unghia che al corno di un bovino.
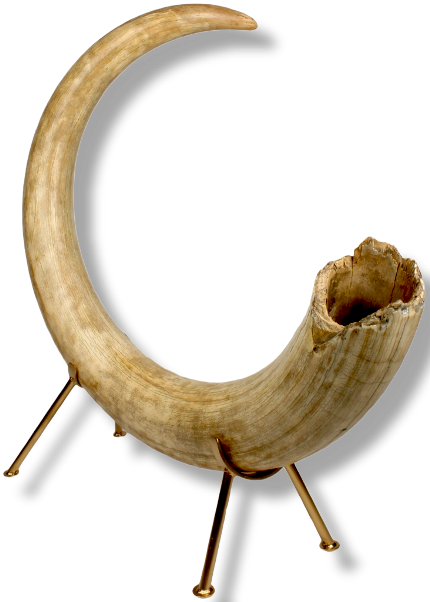
Il rinoceronte lanoso ne portava due: un grande corno nasale sulla parte anteriore del cranio e un corno frontale assai più piccolo tra gli occhi. Il corno nasale era appiattito lateralmente e ricurvo all'indietro in un lungo arco a sciabola, una forma senza riscontro fra le cinque specie di rinoceronte viventi, le cui corna sono rotonde in sezione. Uno studio recente su 47 corna nasali di adulti provenienti dal permafrost jacuto ha rilevato lunghezze, misurate lungo la curvatura anteriore, comprese fra 68,5 e 134 cm (27–52,8 in), con una media di 101,7 cm (40 in) — all'incirca il doppio del corno anteriore medio di un rinoceronte bianco — e masse comprese fra 2,5 e 11,4 kg (5,5–25,1 lb), con una media di poco superiore ai 6 kg (13,2 lb).
Nel 2024, sul fiume Mustur-Yuryuye in Jacuzia, è stato recuperato un corno lungo 164,7 cm (64,8 in) lungo la curvatura anteriore e del peso di circa 9 kg (19,8 lb). È il corno di rinoceronte più lungo mai registrato: supera il precedente record di Coelodonta di 30,7 cm (12,1 in) e il corno di rinoceronte bianco attuale meglio documentato di 6,6 cm (2,6 in). Il cranio associato era relativamente piccolo, il che suggerisce un animale femmina. Il materiale associato è stato datato a circa 19.700 anni fa.
Queste corna erano strumenti di lavoro non meno che armi. Portano faccette di usura appaiate sui lati sinistro e destro, prodotte da un movimento di spazzamento laterale — quasi certamente impiegato per liberare dalla neve sottile le zone di pascolo o per staccare la vegetazione gelata al suolo. Alcuni crani mostrano inoltre ferite inferte dalle corna anteriori di altri rinoceronti, e uno dei dipinti della Grotta Chauvet raffigura due animali affrontati con le corna incrociate.
Il corno frontale era assai più modesto. Gli esemplari meglio documentati arrivano a circa 40 cm (15,7 in), mentre il più grande registrato misura 47,5 cm (18,7 in).
Il cranio presenta un secondo tratto insolito. Negli adulti — più spesso nei maschi — il setto nasale era ossificato, trasformato in osso, cosa che nessun rinoceronte vivente mostra. Viene generalmente interpretato come un rinforzo della faccia contro le sollecitazioni generate quando il corno lavorava contro il terreno gelato. È l'origine dell'antico sinonimo tichorhinus, dal greco «naso murato».
Dieta, crescita e longevità
Il rinoceronte lanoso era un pascolatore. I denti erano ipsodonti, con smalto spesso e ricchi di cemento, ben adatti a graminacee abrasive e ricche di silice e al pulviscolo minerale ingerito con esse; gli adulti erano privi di incisivi, e l'ampio labbro superiore ricordava quello del rinoceronte bianco, permettendogli di brucare la vegetazione direttamente da terra.
I contenuti stomacali restituiscono la dieta in modo diretto. Nella mummia della Kolyma il polline di graminacee costituiva il 46% del campione e l'artemisia (Artemisia) il 41%, con una ricca varietà di altre erbe. Il materiale proveniente dagli esemplari di Khalbuy e Čurapča mostra la stessa prevalenza di graminacee e di erbe basse. Le analisi degli isotopi stabili sulle bande di accrescimento delle corna indicano che la dieta variava con le stagioni, con una maggiore quota di materiale legnoso e arbustivo in inverno.
La crescita è stata ricostruita a partire da mandibole e ossa degli arti di individui giovani. Un vitello di un mese misurava circa 72 cm (28,3 in) al garrese e circa 120 cm (47,2 in) di lunghezza. La crescita era più rapida fra i tre e i quattro anni, quando l'altezza al garrese raggiungeva circa 1,3 m (4 ft 3 in); gli animali diventavano giovani adulti fra i sette e i dieci anni, a 1,4–1,5 m (4 ft 7 in – 4 ft 11 in), ed erano pienamente maturi oltre i quattordici anni, attorno a 1,6 m (5 ft 3 in). Le femmine avevano due capezzoli, il che indica un solo piccolo — occasionalmente due — come nei rinoceronti attuali.
La longevità si legge direttamente sul corno, che cresce in bande annuali di cheratina più chiara e densa alternate a cheratina più scura e più lassa. Queste bande corrispondono strettamente agli strati annuali depositati nel cemento dentario, il che ne fa una struttura affidabile per la determinazione dell'età. Il corno record del Mustur-Yuryuye porta da 40 a 41 strati annuali, indicando un animale che superò i quarant'anni — l'età massima registrata per i rinoceronti attuali in cattività. Gli adulti avevano pochi predatori; i piccoli e i giovani venivano catturati da leoni e iene delle caverne.
L'uomo e il rinoceronte lanoso
Prima della scoperta della Grotta Chauvet, nel sud della Francia, si conoscevano una ventina di raffigurazioni paleolitiche del rinoceronte lanoso; lì ne emersero altre 65 fra dipinti e incisioni. L'animale compare anche a Rouffignac, Lascaux e Font-de-Gaume, in pigmento rosso nella Grotta di Kapova negli Urali, e su incisioni portatili su ardesia provenienti da Gönnersdorf, in Germania. Le immagini sono costanti e riconoscibili: la testa bassa, il dorso rilevato, il lungo corno ricurvo in avanti e, in molti casi, una fascia scura sul fianco.
Le prove dirette di caccia sono più esili di quanto l'arte lasci supporre. Per il periodo successivo a 20.000 anni fa la specie compare in meno dell'11% degli insiemi faunistici archeologici siberiani, e non era palesemente una preda abituale. Dove il rinoceronte entrava nella vita degli uomini, lo faceva spesso come materia prima: nel sito di Yana, nella Siberia artica, sono stati recuperati propulsori lunghi mezzo metro ricavati da corno di rinoceronte lanoso, databili a circa 27.000 anni fa, e una lancia di 13.300 anni con punta in corno di rinoceronte, proveniente dall'isola Bol'šoj Ljachovskij, resta il manufatto umano rinvenuto più a nord.
Quando si è estinto il rinoceronte lanoso?
La specie rimase ampiamente diffusa fino a circa 35.000 anni fa, dopo di che il suo areale si contrasse costantemente verso est. Scomparve dalla Gran Bretagna intorno a 35.000 anni fa e dall'Europa occidentale e centrale nell'intervallo compreso fra circa 17.000 e 15.000 anni fa. Le datazioni radiocarboniche più recenti e ben fondate provengono dagli Urali, attorno a 14.900 anni fa, e dalla regione della Lena-Amga, nella Siberia nord-orientale, prossime ai 14.000 anni.
La lettura consueta colloca l'estinzione intorno a 14.000 anni fa, all'inizio o in prossimità dell'inizio del riscaldamento dell'Allerød. Quell'interstadiale fu sensibilmente più caldo di qualunque evento dei cinquanta millenni precedenti e portò precipitazioni più abbondanti — neve compresa — insieme alla sostituzione della vegetazione erbacea bassa con arbusti e alberi. Per un pascolatore dalle zampe corte, dipendente da spazi aperti e da neve sottile, entrambi i cambiamenti furono gravi.
Due filoni di ricerca più recenti complicano il quadro anziché sostituirlo. Un'analisi genomica pubblicata nel 2020 ha trovato la popolazione della Siberia nord-orientale ancora numerosa, stabile e geneticamente diversificata solo pochi millenni prima della sua scomparsa, il che depone contro un lungo declino dovuto alla caccia; lo stesso studio ha individuato varianti di adattamento al freddo condivise con il mammut lanoso. Separatamente, uno studio di modellizzazione del 2024, che ha combinato diverse centinaia di fossili datati con DNA antico, ha concluso che la frammentazione dell'habitat dovuta al clima, unita a una caccia umana modesta ma persistente — nell'ordine del 10% della popolazione per generazione — abbia intrappolato i gruppi superstiti in habitat isolati e di scarsa qualità, con l'estinzione definitiva nella Siberia nord-orientale attorno a 8.700 anni fa. Il DNA ambientale recuperato da sedimenti della Kolyma datati a circa 9.800 anni fa punta nella stessa direzione, benché resti dibattuto se quel materiale possa essere stato rimaneggiato da strati più antichi.
Come per il mammut lanoso, non esiste un verdetto scientifico unico e definitivo.
Perché i crani si conservano
I resti di rinoceronte lanoso ci giungono per la stessa ragione dell'avorio di mammut: il permafrost siberiano. Un terreno che resta a 0 °C (32 °F) o al di sotto anno dopo anno, in condizioni fredde e povere di ossigeno, conserva il materiale organico per decine di migliaia di anni. Ogni estate lo strato superficiale si scongela e libera ciò che custodisce, e l'attività mineraria alluvionale e l'erosione fluviale ne espongono molto di più.
Il materiale resta comunque scarso. I resti di rinoceronte lanoso sono nettamente meno comuni di quelli di mammut, e i crani completi e ben conservati con la mandibola corrispondente lo sono ancora di più. Le corna originali sono più rare ancora — essendo di cheratina e non di osso, si staccano facilmente dal cranio e si decompongono rapidamente, e sopravvivono quasi esclusivamente nel permafrost profondo della Jacuzia settentrionale e della Ciukotka occidentale. Un cranio recuperato con entrambe le corna originali ancora al loro posto è un evento da museo, non da mercato.
I nostri crani di rinoceronte lanoso
Offriamo un piccolo numero di crani di rinoceronte lanoso all'interno dei nostri Pezzi da Collezione. Ogni cranio che vendiamo è naturale, e offriamo esclusivamente pezzi completi: il cranio superiore insieme alla mandibola corrispondente. Non vendiamo assemblaggi non corrispondenti né ricomposti.
Ogni pezzo viene esaminato a fondo prima di essere accettato, poi pulito, essiccato per un lungo periodo e preparato interamente a mano. È un lavoro lento e meticoloso, per il quale non esistono scorciatoie. Il risultato risponde allo stesso standard di tutto ciò che offriamo.
Sui nostri crani non viene eseguito alcun intervento di restauro. Non vi sono compositi, né riempitivi epossidici, né sezioni ricostruite. Quando un dente originale si è allentato nel proprio alveolo, lo incolliamo nuovamente in sede, poiché un dente mobile col tempo cade e si rompe; i denti sono sempre quelli dell'animale, e nulla viene aggiunto o sostituito. L'unico altro intervento è il fissaggio delle corna descritto più avanti, non visibile a occhio nudo.
Entrambe le corna sono repliche di qualità museale, ottenute per calco da corna originali di rinoceronte lanoso e dipinte a mano per riprodurre il colore degli originali. Data la rarità delle corna in cheratina conservate, questo è l'unico modo onesto di presentare un animale completo, e lo diciamo apertamente. Le repliche sono tenute in posizione da magneti potenti, con due magneti inseriti nel cranio superiore. Il fissaggio magnetico è nettamente preferibile alla colla o ai fissaggi meccanici: mantiene saldamente le corna in posizione espositiva, ma consente di sollevarle in pochi secondi per un trasporto o uno spostamento sicuri. Nulla è incollato, e nulla deve essere rotto per movimentare il pezzo.
Ogni supporto è realizzato su misura per il singolo cranio. È fabbricato in acciaio e verniciato a polvere in un nero profondo, così che il sostegno resti discreto e sia il cranio a reggere l'ambiente.
Non esistono due crani uguali. Ogni animale è cresciuto, si è nutrito, ha combattuto ed è invecchiato in modo diverso, e il cranio ne conserva traccia — nelle proporzioni, nel colore, nella texture della superficie e nell'usura dei denti. È proprio questa individualità a rendere questi pezzi così interessanti per collezioni di fossili su misura, per progetti di interior design e per chiunque desideri un oggetto dotato di una biografia autentica anziché di un semplice effetto decorativo.
Come esporre un cranio di rinoceronte lanoso
I nostri crani non richiedono manutenzione. Chiedono le stesse condizioni di una zanna di mammut: un interno normale e riscaldato, a temperatura ambiente ordinaria, mantenuta ragionevolmente stabile. Sull'osso non occorre applicare nulla — né oli, né cere, né lucidanti o detergenti. Spolverate con un pennello morbido e asciutto o con un panno di cotone asciutto, e per il resto lasciate stare la superficie.
Ciò che conta di più è la stabilità, non un valore preciso. L'osso subfossile è igroscopico: assorbe e cede umidità al variare dell'aria circostante, e sono le oscillazioni ripetute, non il livello assoluto, a metterlo sotto sforzo. La pratica museale per collezioni di questo tipo lavora generalmente con un'umidità relativa compresa fra il 40 e il 60%, evitando variazioni brusche nell'arco delle 24 ore; le indicazioni conservative specifiche per l'osso subfossile privilegiano la fascia più stretta del 45–55% a circa 18–22 °C (65–72 °F). Un ambiente domestico o di lavoro normalmente riscaldato e normalmente ventilato si colloca di solito abbastanza vicino a questi valori senza alcun intervento.
In pratica, le collocazioni da evitare sono quelle ovvie. Tenete il pezzo lontano dalla luce solare diretta, da radiatori e bocchette di riscaldamento, da camini aperti, nonché da ambienti non riscaldati o umidi come cantine, garage e locali accessori non isolati. Un'umidità stabilmente superiore al 65% favorisce le muffe; una secchezza stabilmente inferiore al 40% incoraggia ritiri e fessurazioni superficiali. Se il cranio viene illuminato in modo mirato, sono preferibili sorgenti LED, che emettono pochissimo calore.
Quando spostate un pezzo, rimuovete prima le corna — è esattamente a questo che serve il fissaggio magnetico — e afferrate il cranio dal supporto o dalla massa solida della scatola cranica e della mandibola, mai dai fragili archi zigomatici o dalla regione nasale. Un cranio di rinoceronte lanoso è pesante e merita un piedistallo o un piano in grado di sostenerlo agevolmente, oltre a una posizione lontana dal passaggio. Per il resto, si prende cura di sé da solo.
Un sopravvissuto di un mondo scomparso
Un cranio di rinoceronte lanoso è la testa di un animale che pascolava una prateria che oggi non esiste più in nessun luogo della Terra, accanto a mammut e leoni delle caverne, in un'epoca in cui le calotte glaciali arrivavano fino all'Europa centrale. È uno dei pochi oggetti capaci di posare quel mondo su un tavolo davanti a voi.
Per ulteriori domande o chiarimenti, scriveteci: info@arcticantiques.com
Bibliografia
Boeskorov, G. G., Lazarev, P. A., Sher, A. V., Davydov, S. P., Bakulina, N. T., Shchelchkova, M. V., Binladen, J., Willerslev, E., Buigues, B., & Tikhonov, A. N. (2011). "Woolly rhino discovery in the lower Kolyma River." Quaternary Science Reviews, 30(17–18), 2262–2272. [Dimensioni e massa corporee; spessore della pelle; lunghezza di orecchie e coda; misure delle corna; contenuti stomacali; due capezzoli]
Boeskorov, G. G., Cheprasov, M. Yu., Novgorodov, G. P., Shchelchkova, M. V., Prilepskaya, N. E., & Belyaev, R. I. (2025). "The longest known rhino horn from the permafrost of Yakutia offers insights into woolly rhinoceros morphology, palaeoecology and sexual dimorphism." Journal of Zoology. [Campione di 47 corna nasali; intervalli di lunghezza e massa; il corno record di 164,7 cm; bande annuali ed età massima registrata]
Boeskorov, G. G., Shchelchkova, M. V., Protopopov, A. V., Kryukova, N. V., & Belyaev, R. I. (2024). "Reshaping a woolly rhinoceros: Discovery of a fat hump on its back." Quaternary Science Reviews, 345, 109013. [La mummia di Abyj e la prima conferma fisica della gobba scapolare]
Boeskorov, G. G. (2012). "Some specific morphological and ecological features of the fossil woolly rhinoceros (Coelodonta antiquitatis Blumenbach 1799)." Biology Bulletin, 39(8), 692–707. [Struttura del mantello; preferenze di habitat; morfologia generale]
Stuart, A. J., & Lister, A. M. (2012). "Extinction chronology of the woolly rhinoceros Coelodonta antiquitatis in the context of late Quaternary megafaunal extinctions in northern Eurasia." Quaternary Science Reviews, 51, 1–17. [Areale e sua contrazione; cronologia radiocarbonica; estinzione attorno a 14.000 anni fa; assenza dal Nord America; faccette di usura delle corna; arte rupestre]
Deng, T., Wang, X., Fortelius, M., Li, Q., Wang, Y., Tseng, Z. J., Takeuchi, G. T., Saylor, J. E., Säilä, L. K., & Xie, G. (2011). "Out of Tibet: Pliocene Woolly Rhino Suggests High-Plateau Origin of Ice Age Megaherbivores." Science, 333(6047), 1285–1288. [Coelodonta thibetana; l'ipotesi «Out of Tibet»]
Kahlke, R.-D., & Lacombat, F. (2008). "The earliest immigration of woolly rhinoceros (Coelodonta tologoijensis, Rhinocerotidae, Mammalia) into Europe and its adaptive evolution in Palaearctic cold stage mammal faunas." Quaternary Science Reviews, 27(21–22), 1951–1961. [Arrivo in Europa; tendenze evolutive di cranio e dentatura]
Lord, E., Dussex, N., Kierczak, M., et al. (2020). "Pre-extinction Demographic Stability and Genomic Signatures of Adaptation in the Woolly Rhinoceros." Current Biology, 30(19), 3871–3879. [Stabilità della popolazione prima dell'estinzione; varianti di adattamento al freddo condivise con il mammut lanoso]
Fordham, D. A., Brown, S. C., Canteri, E., et al. (2024). "52,000 years of woolly rhinoceros population dynamics reveal extinction mechanisms." Proceedings of the National Academy of Sciences, 121(24), e2316419121. [Modellizzazione di metapopolazione; caccia contenuta ma persistente; stima di un'estinzione olocenica più tarda]
Wang, Y., Pedersen, M. W., Alsos, I. G., et al. (2021). "Late Quaternary dynamics of Arctic biota from ancient environmental genomics." Nature, 600(7887), 86–92. [DNA ambientale da sedimenti della Kolyma datati a circa 9.800 anni fa]
Liu, S., Westbury, M. V., Dussex, N., et al. (2021). "Ancient and modern genomes unravel the evolutionary history of the rhinoceros family." Cell, 184(19), 4874–4885. [Divergenza dalla linea del rinoceronte di Sumatra]
Fortelius, M. (1983). "The morphology and paleobiological significance of the horns of Coelodonta antiquitatis (Mammalia: Rhinocerotidae)." Journal of Vertebrate Paleontology, 3(2), 125–135. [Morfologia delle corna, faccette di usura e bande annuali]
Belyaev, R. I., Boeskorov, G. G., Cheprasov, M. Yu., & Prilepskaya, N. E. (2023). "A new discovery in the permafrost of Yakutia sheds light on the nasal horn morphology of the woolly rhinoceros." Journal of Morphology, 284(9), e21626. [Morfologia della base del corno nasale e suo attacco al cranio]
Kirillova, I. V., & Shidlovskiy, F. K. (2010). "Estimation of individual age and season of death in woolly rhinoceros, Coelodonta antiquitatis (Blumenbach, 1799), from Sakha-Yakutia, Russia." Quaternary Science Reviews, 29(23–24), 3106–3114. [Rarità delle corna conservate rispetto al materiale scheletrico; il permafrost come principale contesto di conservazione]
Shidlovskiy, F. K., Kirillova, I. V., & Wood, J. (2012). "Horns of the woolly rhinoceros Coelodonta antiquitatis (Blumenbach, 1799) in the Ice Age Museum collection (Moscow, Russia)." Quaternary International, 255, 125–129. [Schemi di abrasione delle corna; ossificazione del setto nasale]
Shpansky, A. V. (2014). "Juvenile remains of the 'woolly rhinoceros' Coelodonta antiquitatis (Blumenbach 1799) (Mammalia, Rhinocerotidae) from the Tomsk Priob'e area (southeast Western Siberia)." Quaternary International, 333, 86–99. [Stadi di crescita e altezze al garrese, dal vitello all'adulto anziano]
Garutt, N. V. (1998). Woolly Rhinoceros: Morphology, Systematics and Geological Significance (sintesi della tesi di dottorato). [Setto nasale ossificato; determinazione dell'età dal corno]
Garutt, N. V. (1997). "Traumatic skull damages in the woolly rhinoceros, Coelodonta antiquitatis Blumenbach, 1799." Cranium, 14(1), 37–46. [Ferite da combattimenti intraspecifici; predazione sui giovani]
Tiunov, A. V., & Kirillova, I. V. (2010). "Stable isotope (13C/12C and 15N/14N) composition of the woolly rhinoceros Coelodonta antiquitatis horn suggests seasonal changes in the diet." Rapid Communications in Mass Spectrometry, 24(21), 3146–3150. [Variazione stagionale della dieta registrata nelle bande del corno]
Willerslev, E., Davison, J., Moora, M., et al. (2014). "Fifty thousand years of Arctic vegetation and megafaunal diet." Nature, 506(7486), 47–51. [Consumo di erbe non graminoidi e di graminoidi nelle popolazioni artiche durante l'ultimo massimo glaciale]
Schreve, D., Howard, A., Currant, A., et al. (2013). "A Middle Devensian woolly rhinoceros (Coelodonta antiquitatis) from Whitemoor Haye Quarry, Staffordshire (UK): palaeoenvironmental context and significance." Journal of Quaternary Science, 28(2), 118–130. [Evidenze biomeccaniche di una dieta da pascolatore]
Nikolskiy, P., & Pitulko, V. (2013). "Evidence from the Yana Palaeolithic site, Arctic Siberia, yields clues to the riddle of mammoth hunting." Journal of Archaeological Science, 40(12), 4189–4197. [Propulsori realizzati in corno di rinoceronte lanoso]
American Museum of Natural History. "Temperature and Relative Humidity." Agents of Deterioration, Preventive Conservation. [Umidità relativa raccomandata del 40–60% e limiti alle fluttuazioni a breve termine]
Florida Museum of Natural History, Vertebrate Paleontology Collection. "Preparation and Conservation." [Ambiente ottimale per l'osso subfossile: 45–55% di umidità relativa a circa 18–22 °C; rischi di essiccazione e di sviluppo di muffe]