Was ist ein Wollnashorn?
Das Wollnashorn (wissenschaftlicher Name: Coelodonta antiquitatis) war ein schwer gebautes, kälteangepasstes Nashorn, das über mehr als 400.000 Jahre hinweg und durch eine Abfolge von Kaltzeiten das nördliche Eurasien bewohnte, bevor es vor rund 14.000 Jahren ausstarb. Es war nach dem Wollhaarmammut das zweitgrößte Landsäugetier der Mammutsteppe, und das längste jemals verzeichnete Nashornhorn stammt von dieser Art. Ihre Schädel gehören zu den eindrucksvollsten Objekten, die aus dem sibirischen Permafrost zutage treten.
Ein Nashorn, gebaut für die Eiszeit
Stellen Sie sich die Mammutsteppe auf dem Höhepunkt der letzten Vereisung vor: ein trockenes, baumloses Grasland, das sich von der Atlantikküste Europas bis zur Beringsee erstreckte – dem nördlichsten Arm des Pazifiks zwischen Nordostsibirien und Alaska – mit kalten, klaren Wintern, dünner Schneedecke und festem Untergrund. Diese Landschaft trug ein außergewöhnliches Gewicht an großen Pflanzenfressern – Mammut, Steppenbison, Wildpferd, Rentier, Saigaantilope – und zwischen ihnen bewegte sich ein Tier, das aus der Ferne wie ein großer, flacher dunkler Felsblock wirkte, der sich langsam über das Gras schob.
Das Wollnashorn erreichte eine Widerristhöhe von etwa 1,45–1,60 m (rund 4 ft 9 in bis 5 ft 3 in), maß von Kopf bis Schwanz 3,2–3,6 m (10,5–11,8 ft) und wog etwa 1,5–2 Tonnen (3.300–4.400 lb); für einzelne große Tiere werden noch höhere Werte geschätzt. Damit war es in der Masse dem heutigen Breitmaulnashorn vergleichbar, in den Proportionen jedoch deutlich anders: Das Wollnashorn hatte einen längeren Körper und merklich kürzere Beine. Der Kopf wurde tief und nach vorn geneigt getragen, gehalten von kräftigen Muskeln, die an einem langen, schräg abfallenden Hinterhaupt ansetzten.
Fast jedes Merkmal des Tieres war eine Antwort auf die Kälte. Unter langen, groben Deckhaaren lag eine dichte wollige Unterwolle, am stärksten über Hals und Widerrist ausgeprägt, während die Beine kurzes Haar trugen, an dem Schnee und Eis nicht haften und die Fortbewegung behindern konnten. Die Haut war 5 bis 15 mm (0,2–0,6 in) dick, am dünnsten an den Seiten des Kopfes und am stärksten über Brust, Rücken und Hinterhand, darunter eine Schicht Unterhautfett. Die Ohren erreichten nur 18,5–24 cm (7,3–9,4 in) gegenüber 25–30 cm (9,8–11,8 in) bei einem weiblichen Breitmaulnashorn, und der Schwanz maß etwa 50 cm (19,7 in) statt der bei heutigen Nashörnern üblichen 70–75 cm (27,6–29,5 in). Verkürzte Körperanhänge dieser Art finden sich immer wieder bei Säugetieren kalter Klimazonen, und das Wollhaarmammut zeigt dasselbe Muster.
Eine lange offene Frage wurde erst kürzlich geklärt. Altsteinzeitliche Höhlenmaler stellten Wollnashörner durchweg mit einem ausgeprägten Höcker über den Schultern dar, doch kein Mumienfund hatte je einen solchen gezeigt, und der Höcker galt weithin als künstlerische Freiheit. Dann wurde 2020 am Ufer des Tirechtjach in Jakutien die Mumie eines vierjährigen Tieres geborgen, bei der der Höcker deutlich vorhanden war – ein Fettdepot von rund 40 cm (15,7 in) Länge zwischen Hinterkopf und Schulterblattoberkanten. Die Künstler hatten recht gehabt.
Aus Tibet
Das Wollnashorn erwarb seine Kälteanpassungen nicht, weil die Eiszeit kam. Es brachte sie bereits mit.
2007 wurden im Zanda-Becken im Südwesten Tibets ein vollständiger Schädel und ein Unterkiefer geborgen und als neue Art beschrieben, Coelodonta thibetana, datiert auf rund 3,7 Millionen Jahre – lange vor dem Einsetzen der pleistozänen Vereisungen. Dieses Tier zeigte bereits das abgeflachte Nasenhorn und den niedrigen, ans Grasen angepassten Schädel seiner späteren Verwandten. Daraus entstand die „Out of Tibet"-Hypothese: Die kalten Winter des Hochplateaus dienten einer Reihe eiszeitlicher Großpflanzenfresser als Übungsgelände, sodass sie vorangepasst waren und sich über Eurasien ausbreiten konnten, sobald das Klima abkühlte.
Die Gattung breitete sich im frühen Pleistozän über Sibirien, die Mongolei und China aus. Coelodonta antiquitatis selbst tritt erstmals im frühen Mittelpleistozän in China auf, und die ältesten europäischen Funde der Art datieren auf rund 450.000 Jahre. Die Gattung erreichte Europa noch früher: Ein Coelodonta-Schädel aus Bad Frankenhausen in Deutschland stammt aus kaltzeitlichen Ablagerungen von etwa 460.000 Jahren. Im Verlauf dieser Linie wurde der Schädel zunehmend länger, schmaler und stärker geneigt, die Zahnreihen verschoben sich, und Schmelz und Zement wurden dicker. Jede dieser Veränderungen machte das Tier zu einem besseren Grasfresser.
Sein nächster lebender Verwandter ist nach genomischen Befunden das Sumatra-Nashorn, von dem sich seine Vorfahren vor rund 9,4 Millionen Jahren trennten.
Wo sie lebten
Über diese Hunderttausende von Jahren bildete sein Verbreitungsgebiet in größter Ausdehnung ein breites Band von Nordspanien und Britannien im Westen über Mittel- und Osteuropa bis nach Nordostsibirien, Nordchina und in die Mongolei. Keine andere Nashornart, lebend oder ausgestorben, hat je so viel Raum eingenommen.
Dennoch war es wählerisch, wo es sich niederließ. Es bevorzugte Tiefländer, Hochebenen und Flusstäler mit trockenem Klima, festem Boden und geringer Schneelage und fehlte in Irland, in weiten Teilen Südeuropas, in Nordskandinavien, auf der Taimyr-Halbinsel und auf den japanischen Inseln. Am bezeichnendsten ist, dass es nie nach Nordamerika gelangte – obwohl es auf der Tschuktschen-Halbinsel und auf der Wrangelinsel vorkam, wenige hundert Kilometer von der Beringlandbrücke entfernt, über Zehntausende von Jahren, in denen die Landbrücke über dem Meeresspiegel lag. Die wahrscheinlichste Erklärung ist, dass die Landbrücke für ein kurzbeiniges, schwer gebautes Tier ohne spreizende Hufe oder Fußballen zu nass und sumpfig war. Wollhaarmammut, Höhlenlöwe, Moschusochse und Steppenbison schafften die Überquerung alle. Das Nashorn nicht.
Hörner, wie sie kein lebendes Nashorn trägt
Nashornhorn besitzt keinen Knochenkern. Es ist ein Hautderivat, aufgebaut aus Keratinfilamenten in einer Keratinmatrix und über Bindegewebe und Bänder an Nasen- und Stirnbein befestigt – seiner Natur nach eher einem Huf oder Fingernagel verwandt als dem Horn eines Rindes.
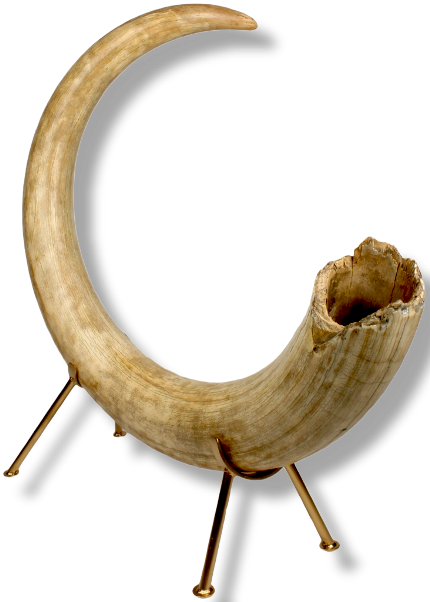
Das Wollnashorn trug zwei davon: ein großes Nasenhorn an der Schädelvorderseite und ein deutlich kleineres Stirnhorn zwischen den Augen. Das Nasenhorn war seitlich abgeflacht und in einem langen säbelartigen Bogen zurückgeschwungen – eine Form ohne Entsprechung bei den fünf lebenden Nashornarten, deren Hörner im Querschnitt rund sind. Eine neuere Untersuchung von 47 Nasenhörnern erwachsener Tiere aus dem jakutischen Permafrost ergab Längen entlang der Vorderkrümmung von 68,5 bis 134 cm (27 bis 52,8 in), im Mittel 101,7 cm (40 in) – etwa das Doppelte des durchschnittlichen Vorderhorns eines Breitmaulnashorns – bei Massen zwischen 2,5 und 11,4 kg (5,5–25,1 lb) und einem Mittelwert von gut 6 kg (13,2 lb).
2024 wurde am Fluss Mustur-Jurjuje in Jakutien ein Horn geborgen, das entlang der vorderen Krümmung 164,7 cm (64,8 in) maß und rund 9 kg (19,8 lb) wog. Es ist das längste jemals verzeichnete Nashornhorn und übertrifft den bisherigen Coelodonta-Rekord um 30,7 cm (12,1 in) und das am besten dokumentierte Horn eines heutigen Breitmaulnashorns um 6,6 cm (2,6 in). Der zugehörige Schädel war vergleichsweise klein, was auf ein weibliches Tier schließen lässt. Begleitmaterial wurde auf rund 19.700 Jahre datiert.
Diese Hörner waren ebenso Arbeitsgerät wie Waffe. Sie tragen paarige Abnutzungsflächen auf der linken und rechten Seite, entstanden durch eine seitlich ausholende Bewegung – mit großer Wahrscheinlichkeit, um dünnen Schnee von der Weide zu räumen oder am Boden festgefrorene Pflanzen zu lösen. Schädel zeigen zudem Verletzungen, die von den Vorderhörnern anderer Nashörner stammen, und eines der Gemälde der Chauvet-Höhle zeigt zwei Tiere, die einander mit verhakten Hörnern gegenüberstehen.
Das Stirnhorn war weit bescheidener. Die am besten dokumentierten Exemplare reichen bis etwa 40 cm (15,7 in), das größte verzeichnete misst 47,5 cm (18,7 in).
Der Schädel weist ein zweites ungewöhnliches Merkmal auf. Bei erwachsenen Tieren – am häufigsten bei Männchen – war die Nasenscheidewand verknöchert, was kein heutiges Nashorn zeigt. Sie wird allgemein als Verstrebung des Gesichtsschädels gegen jene Belastungen gedeutet, die beim Arbeiten des Horns gegen gefrorenen Boden entstanden. Daraus leitet sich das alte Synonym tichorhinus ab, aus dem Griechischen für „Wandnase".
Nahrung, Wachstum und Lebensdauer
Das Wollnashorn war ein Grasfresser. Seine Zähne waren hochkronig, dick geschmelzt und reich an Zement – gut geeignet für abrasive, kieselsäurereiche Gräser und den mit ihnen aufgenommenen Grit. Erwachsene Tiere besaßen keine Schneidezähne, und die breite Oberlippe ähnelte der des Breitmaulnashorns, sodass sie Pflanzen unmittelbar vom Boden abrupfen konnten.
Mageninhalte geben die Nahrung unmittelbar wieder. Bei der Kolyma-Mumie machte Graspollen 46 % der Probe aus und Beifuß (Artemisia) 41 %, dazu eine reiche Vielfalt weiterer Kräuter. Material aus den Funden von Chalbui und Tschuraptscha zeigt dieselbe Vorherrschaft von Gräsern und niedrigen Kräutern. Stabile Isotope in den Wachstumsbändern der Hörner deuten darauf hin, dass sich die Nahrung mit den Jahreszeiten verschob, mit mehr holzigem und strauchigem Material im Winter.
Das Wachstum wurde anhand juveniler Kiefer und Extremitätenknochen rekonstruiert. Ein einen Monat altes Kalb maß etwa 72 cm (28,3 in) Schulterhöhe und rund 120 cm (47,2 in) Länge. Am schnellsten wuchsen die Tiere mit drei bis vier Jahren, wobei die Schulterhöhe etwa 1,3 m (4 ft 3 in) erreichte; mit sieben bis zehn Jahren waren sie junge ausgewachsene Tiere von 1,4–1,5 m (4 ft 7 in bis 4 ft 11 in) und jenseits von vierzehn Jahren voll ausgewachsen bei rund 1,6 m (5 ft 3 in). Weibchen hatten zwei Zitzen, was auf ein einzelnes Kalb – gelegentlich zwei – schließen lässt, wie bei heutigen Nashörnern.
Die Lebensdauer lässt sich unmittelbar am Horn ablesen, das in Jahresbändern aus hellerem, dichterem und dunklerem, lockererem Keratin wächst. Diese Bänder entsprechen eng den Jahresschichten im Zahnzement, was sie zu einer verlässlichen Altersstruktur macht. Das Rekordhorn vom Mustur-Jurjuje trägt 40 bis 41 Jahresschichten und zeigt damit ein Tier an, das über vierzig Jahre alt wurde – ebenso alt wie die ältesten in Gefangenschaft dokumentierten heutigen Nashörner. Erwachsene Tiere hatten wenige Feinde; Kälber und Jungtiere fielen Höhlenlöwen und Höhlenhyänen zum Opfer.
Der Mensch und das Wollnashorn
Vor der Entdeckung der Chauvet-Höhle in Südfrankreich waren rund zwanzig altsteinzeitliche Darstellungen des Wollnashorns bekannt; dort kamen 65 weitere Malereien und Gravuren hinzu. Das Tier erscheint außerdem in Rouffignac, Lascaux und Font-de-Gaume, in roter Farbe in der Kapowa-Höhle im Ural und auf tragbaren Schiefergravuren aus Gönnersdorf in Deutschland. Die Bilder sind einheitlich und unverkennbar: der tief getragene Kopf, der aufgewölbte Rücken, das lange, nach vorn gebogene Horn und in vielen Fällen ein dunkles Band über der Flanke.
Direkte Belege für die Jagd sind dünner, als die Bilder vermuten lassen. Für die Zeit nach 20.000 Jahren vor heute erscheint die Art in weniger als 11 % der sibirischen archäologischen Faunenfunde und war eindeutig kein Hauptbeutetier. Wo das Nashorn in das Leben der Menschen eintrat, geschah dies häufig als Rohstoff: Am Fundplatz Jana in der sibirischen Arktis wurden halbmeterlange Speerschleudern aus Wollnashornhorn geborgen, rund 27.000 Jahre alt, und ein 13.300 Jahre alter Speer mit einer Spitze aus Nashornhorn von der Insel Bolschoi Ljachowski ist bis heute das am weitesten nördlich gefundene menschliche Artefakt.
Wann starb das Wollnashorn aus?
Die Art war bis vor etwa 35.000 Jahren weit verbreitet; danach zog sich ihr Areal stetig nach Osten zurück. Aus Britannien verschwand sie vor rund 35.000 Jahren, aus West- und Mitteleuropa im Zeitraum zwischen etwa 17.000 und 15.000 Jahren vor heute. Die jüngsten gut abgesicherten Radiokohlenstoffdaten stammen aus dem Ural von etwa 14.900 Jahren und aus der Lena-Amga-Region Nordostsibiriens von knapp 14.000 Jahren.
Die gängige Lesart setzt das Aussterben auf rund 14.000 Jahre vor heute an, zu Beginn oder nahe dem Beginn der Allerød-Erwärmung. Dieses Interstadial war deutlich wärmer als jedes Ereignis der vorangegangenen fünfzig Jahrtausende und brachte höhere Niederschläge – darunter Schneefall – sowie die Ablösung niedriger krautiger Vegetation durch Sträucher und Bäume. Für einen kurzbeinigen Grasfresser, der auf offenes Gelände und dünne Schneedecken angewiesen war, wogen beide Veränderungen schwer.
Zwei neuere Forschungslinien verkomplizieren dieses Bild, ohne es zu ersetzen. Eine 2020 veröffentlichte Genomanalyse fand die nordostsibirische Population noch wenige Jahrtausende vor ihrem Verschwinden groß, stabil und genetisch vielfältig, was gegen einen langen, durch Bejagung getriebenen Rückgang spricht; dieselbe Studie identifizierte Kälteanpassungsvarianten, die auch beim Wollhaarmammut auftreten. Davon getrennt kam eine Modellierungsstudie von 2024, die mehrere hundert datierte Fossilien mit alter DNA verband, zu dem Schluss, dass klimabedingte Lebensraumzersplitterung zusammen mit geringer, aber anhaltender menschlicher Bejagung – in der Größenordnung von 10 % der Population je Generation – überlebende Gruppen in isolierten, minderwertigen Habitaten festsetzte, mit endgültigem Aussterben in Nordostsibirien erst vor etwa 8.700 Jahren. Umwelt-DNA aus Kolyma-Sedimenten von rund 9.800 Jahren weist in dieselbe Richtung, wobei umstritten bleibt, ob dieses Material aus älteren Schichten umgelagert sein könnte.
Wie beim Wollhaarmammut gibt es kein einzelnes gesichertes wissenschaftliches Urteil.
Warum die Schädel erhalten blieben
Wollnashornreste erreichen uns aus demselben Grund wie Mammutelfenbein: durch den sibirischen Permafrost. Boden, der Jahr für Jahr bei oder unter 0 °C (32 °F) bleibt, konserviert unter kalten und sauerstoffarmen Bedingungen organisches Material über Zehntausende von Jahren. Jeden Sommer taut die Oberflächenschicht auf und gibt frei, was sie birgt; Seifenbergbau und Flusserosion legen sehr viel mehr frei.
Dennoch ist das Material knapp. Wollnashornreste sind deutlich seltener als Mammutreste, und vollständige, gut erhaltene Schädel mit dem zugehörigen Unterkiefer sind noch seltener. Originalhörner sind nochmals seltener – da sie aus Keratin und nicht aus Knochen bestehen, lösen sie sich leicht vom Schädel und zersetzen sich rasch; erhalten bleiben sie fast ausschließlich im tiefen Permafrost Nordjakutiens und Westtschukotkas. Ein Schädel, der mit beiden Originalhörnern geborgen wird, ist ein Ereignis für Museen, nicht für den Handel.
Unsere Wollnashorn-Schädel
Wir bieten eine kleine Zahl von Wollnashorn-Schädeln innerhalb unserer Sammlerstücke an. Jeder Schädel, den wir verkaufen, ist natürlich, und wir bieten ausschließlich vollständige Stücke an: den Oberschädel zusammen mit dem dazugehörigen Unterkiefer. Nicht zusammengehörige oder zusammengesetzte Stücke verkaufen wir nicht.
Jedes Stück wird vor der Annahme gründlich geprüft, dann gereinigt, über einen langen Zeitraum getrocknet und vollständig von Hand aufbereitet. Das ist langsame, mühevolle Arbeit, für die es keine Abkürzung gibt. Das Ergebnis entspricht demselben Standard wie alles andere, was wir anbieten.
An unseren Schädeln werden keine Restaurierungsarbeiten vorgenommen. Es gibt keine Kompositwerkstoffe, keine Epoxidfüllungen und keine rekonstruierten Partien. Hat sich ein originaler Zahn in seiner Alveole gelockert, kleben wir ihn wieder ein, da ein loser Zahn mit der Zeit herausfällt und zerbricht; die Zähne sind stets die des Tieres selbst, und nichts wird ergänzt oder ersetzt. Der einzige weitere Eingriff ist die unten beschriebene Hornbefestigung, die mit bloßem Auge nicht zu erkennen ist.
Beide Hörner sind Repliken in Museumsqualität, abgeformt von originalen Wollnashornhörnern und von Hand in der Farbe der Originale gefasst. Angesichts der Seltenheit erhaltener Keratinhörner ist dies der einzige redliche Weg, ein vollständiges Tier zu zeigen, und wir sagen das offen. Die Repliken werden von starken Magneten gehalten; dazu sind zwei Magnete in den Oberschädel eingelassen. Eine magnetische Befestigung ist Klebstoff oder mechanischen Verbindungen deutlich überlegen: Sie hält die Hörner in Ausstellungsposition sicher, erlaubt es aber, sie für den sicheren Transport oder einen Standortwechsel in Sekunden abzunehmen. Nichts ist verklebt, und nichts muss zerstört werden, um das Stück zu bewegen.
Jeder Ständer wird für den einzelnen Schädel maßgefertigt. Er ist aus Stahl gefertigt und in tiefem Schwarz pulverbeschichtet, sodass die Halterung zurücktritt und der Schädel den Raum trägt.
Keine zwei Schädel gleichen einander. Jedes Tier wuchs, fraß, kämpfte und alterte anders, und der Schädel hält das fest – in den Proportionen, in der Farbe, in der Oberflächenstruktur und in der Abnutzung der Zähne. Genau diese Individualität macht diese Stücke so reizvoll für anspruchsvolle Fossiliensammlungen, für Projekte der Innenarchitektur und für alle, die ein Objekt mit einer echten Biographie und nicht bloß mit dekorativer Wirkung suchen.
Wie man einen Wollnashorn-Schädel präsentiert
Unsere Schädel sind wartungsfrei. Sie verlangen dieselben Bedingungen wie ein Mammutstoßzahn: einen normalen, beheizten Innenraum bei üblicher Zimmertemperatur, möglichst gleichbleibend. Auf den Knochen muss nichts aufgetragen werden – keine Öle, Wachse, Polituren oder Reinigungsmittel. Stauben Sie mit einem weichen trockenen Pinsel oder einem trockenen Baumwolltuch ab und lassen Sie die Oberfläche ansonsten unberührt.
Entscheidend ist Beständigkeit, nicht ein bestimmter Zahlenwert. Subfossiler Knochen ist hygroskopisch: Er nimmt Feuchtigkeit auf und gibt sie ab, wenn sich die umgebende Luft ändert, und Belastungen entstehen durch wiederholte Schwankungen, nicht durch das absolute Niveau. Museumspraxis für Sammlungen dieser Art arbeitet in der Regel mit einer relativen Luftfeuchte im Bereich von 40–60 % und vermeidet starke Bewegungen innerhalb von 24 Stunden; konservatorische Empfehlungen speziell für subfossilen Knochen bevorzugen das engere Band von 45–55 % bei etwa 18–22 °C (65–72 °F). Ein normal beheizter, normal belüfteter Wohn- oder Arbeitsraum liegt dem üblicherweise nahe genug, ohne dass etwas unternommen werden müsste.
In der Praxis sind die zu meidenden Standorte die naheliegenden. Halten Sie das Stück fern von direkter Sonneneinstrahlung, von Heizkörpern und Heizungsauslässen, von offenen Kaminen sowie von ungeheizten oder feuchten Räumen wie Kellern, Garagen und ungedämmten Nebengebäuden. Anhaltende Luftfeuchte deutlich über 65 % begünstigt Schimmel; anhaltende Trockenheit deutlich unter 40 % fördert Schwund und Oberflächenrisse. Wird ein Schädel gezielt beleuchtet, sind LED-Leuchtmittel vorzuziehen, da sie kaum Wärme abgeben.
Beim Bewegen eines Stücks nehmen Sie zuerst die Hörner ab – genau dafür ist die magnetische Befestigung da – und fassen Sie den Schädel am Ständer oder an der festen Masse von Hirnschädel und Kiefer, niemals an den empfindlichen Jochbögen oder im Nasenbereich. Ein Wollnashorn-Schädel ist schwer und verdient einen Sockel oder eine Fläche, die ihn bequem trägt, sowie einen Platz abseits des allgemeinen Durchgangsverkehrs. Darüber hinaus kommt er allein zurecht.
Ein Überlebender einer verschwundenen Welt
Ein Wollnashorn-Schädel ist der Kopf eines Tieres, das ein Grasland beweidete, das es heute nirgendwo auf der Erde mehr gibt – neben Mammuten und Höhlenlöwen, zu einer Zeit, als die Eisschilde bis nach Mitteleuropa reichten. Er gehört zu den wenigen Objekten, die diese Welt auf einen Tisch vor Ihnen stellen können.
Bei weiteren Fragen oder wenn Sie zusätzliche Erläuterungen wünschen, schreiben Sie uns bitte: info@arcticantiques.com
Bibliographie
Boeskorov, G. G., Lazarev, P. A., Sher, A. V., Davydov, S. P., Bakulina, N. T., Shchelchkova, M. V., Binladen, J., Willerslev, E., Buigues, B., & Tikhonov, A. N. (2011). "Woolly rhino discovery in the lower Kolyma River." Quaternary Science Reviews, 30(17–18), 2262–2272. [Körpermaße und Masse; Hautdicke; Ohren- und Schwanzlänge; Hornmaße; Mageninhalt; zwei Zitzen]
Boeskorov, G. G., Cheprasov, M. Yu., Novgorodov, G. P., Shchelchkova, M. V., Prilepskaya, N. E., & Belyaev, R. I. (2025). "The longest known rhino horn from the permafrost of Yakutia offers insights into woolly rhinoceros morphology, palaeoecology and sexual dimorphism." Journal of Zoology. [Stichprobe von 47 Nasenhörnern; Längen- und Massenbereiche; das Rekordhorn von 164,7 cm; Jahresbänderung und höchstes belegtes Alter]
Boeskorov, G. G., Shchelchkova, M. V., Protopopov, A. V., Kryukova, N. V., & Belyaev, R. I. (2024). "Reshaping a woolly rhinoceros: Discovery of a fat hump on its back." Quaternary Science Reviews, 345, 109013. [Die Abyi-Mumie und der erste physische Nachweis des Schulterhöckers]
Boeskorov, G. G. (2012). "Some specific morphological and ecological features of the fossil woolly rhinoceros (Coelodonta antiquitatis Blumenbach 1799)." Biology Bulletin, 39(8), 692–707. [Fellaufbau; Habitatpräferenz; allgemeine Morphologie]
Stuart, A. J., & Lister, A. M. (2012). "Extinction chronology of the woolly rhinoceros Coelodonta antiquitatis in the context of late Quaternary megafaunal extinctions in northern Eurasia." Quaternary Science Reviews, 51, 1–17. [Verbreitung und Arealrückgang; Radiokohlenstoffchronologie; Aussterben um 14.000 Jahre vor heute; Fehlen in Nordamerika; Abnutzungsflächen der Hörner; Höhlenkunst]
Deng, T., Wang, X., Fortelius, M., Li, Q., Wang, Y., Tseng, Z. J., Takeuchi, G. T., Saylor, J. E., Säilä, L. K., & Xie, G. (2011). "Out of Tibet: Pliocene Woolly Rhino Suggests High-Plateau Origin of Ice Age Megaherbivores." Science, 333(6047), 1285–1288. [Coelodonta thibetana; die „Out of Tibet"-Hypothese]
Kahlke, R.-D., & Lacombat, F. (2008). "The earliest immigration of woolly rhinoceros (Coelodonta tologoijensis, Rhinocerotidae, Mammalia) into Europe and its adaptive evolution in Palaearctic cold stage mammal faunas." Quaternary Science Reviews, 27(21–22), 1951–1961. [Ankunft in Europa; evolutionäre Trends an Schädel und Gebiss]
Lord, E., Dussex, N., Kierczak, M., et al. (2020). "Pre-extinction Demographic Stability and Genomic Signatures of Adaptation in the Woolly Rhinoceros." Current Biology, 30(19), 3871–3879. [Populationsstabilität vor dem Aussterben; mit dem Wollhaarmammut geteilte Kälteanpassungsvarianten]
Fordham, D. A., Brown, S. C., Canteri, E., et al. (2024). "52,000 years of woolly rhinoceros population dynamics reveal extinction mechanisms." Proceedings of the National Academy of Sciences, 121(24), e2316419121. [Metapopulationsmodellierung; anhaltende geringe Bejagung; späteres holozänes Aussterbedatum]
Wang, Y., Pedersen, M. W., Alsos, I. G., et al. (2021). "Late Quaternary dynamics of Arctic biota from ancient environmental genomics." Nature, 600(7887), 86–92. [Umwelt-DNA aus Kolyma-Sedimenten, datiert auf rund 9.800 Jahre]
Liu, S., Westbury, M. V., Dussex, N., et al. (2021). "Ancient and modern genomes unravel the evolutionary history of the rhinoceros family." Cell, 184(19), 4874–4885. [Abspaltung von der Linie des Sumatra-Nashorns]
Fortelius, M. (1983). "The morphology and paleobiological significance of the horns of Coelodonta antiquitatis (Mammalia: Rhinocerotidae)." Journal of Vertebrate Paleontology, 3(2), 125–135. [Hornmorphologie, Abnutzungsflächen und Jahresbänderung]
Belyaev, R. I., Boeskorov, G. G., Cheprasov, M. Yu., & Prilepskaya, N. E. (2023). "A new discovery in the permafrost of Yakutia sheds light on the nasal horn morphology of the woolly rhinoceros." Journal of Morphology, 284(9), e21626. [Morphologie der Nasenhornbasis und ihre Verbindung zum Schädel]
Kirillova, I. V., & Shidlovskiy, F. K. (2010). "Estimation of individual age and season of death in woolly rhinoceros, Coelodonta antiquitatis (Blumenbach, 1799), from Sakha-Yakutia, Russia." Quaternary Science Reviews, 29(23–24), 3106–3114. [Seltenheit erhaltener Hörner gegenüber Skelettmaterial; Permafrost als wichtigstes Erhaltungsmilieu]
Shidlovskiy, F. K., Kirillova, I. V., & Wood, J. (2012). "Horns of the woolly rhinoceros Coelodonta antiquitatis (Blumenbach, 1799) in the Ice Age Museum collection (Moscow, Russia)." Quaternary International, 255, 125–129. [Abnutzungsmuster der Hörner; Verknöcherung der Nasenscheidewand]
Shpansky, A. V. (2014). "Juvenile remains of the 'woolly rhinoceros' Coelodonta antiquitatis (Blumenbach 1799) (Mammalia, Rhinocerotidae) from the Tomsk Priob'e area (southeast Western Siberia)." Quaternary International, 333, 86–99. [Wachstumsstadien und Schulterhöhen vom Kalb bis zum alten Tier]
Garutt, N. V. (1998). Woolly Rhinoceros: Morphology, Systematics and Geological Significance (Zusammenfassung der Dissertation). [Verknöcherte Nasenscheidewand; Altersbestimmung am Horn]
Garutt, N. V. (1997). "Traumatic skull damages in the woolly rhinoceros, Coelodonta antiquitatis Blumenbach, 1799." Cranium, 14(1), 37–46. [Verletzungen aus innerartlichen Kämpfen; Beutegreifer an Jungtieren]
Tiunov, A. V., & Kirillova, I. V. (2010). "Stable isotope (13C/12C and 15N/14N) composition of the woolly rhinoceros Coelodonta antiquitatis horn suggests seasonal changes in the diet." Rapid Communications in Mass Spectrometry, 24(21), 3146–3150. [Jahreszeitliche Nahrungsverschiebung, aufgezeichnet in der Hornbänderung]
Willerslev, E., Davison, J., Moora, M., et al. (2014). "Fifty thousand years of Arctic vegetation and megafaunal diet." Nature, 506(7486), 47–51. [Aufnahme von Kräutern und Süßgräsern in arktischen Populationen während des letzten glazialen Maximums]
Schreve, D., Howard, A., Currant, A., et al. (2013). "A Middle Devensian woolly rhinoceros (Coelodonta antiquitatis) from Whitemoor Haye Quarry, Staffordshire (UK): palaeoenvironmental context and significance." Journal of Quaternary Science, 28(2), 118–130. [Biomechanische Belege für eine grasfressende Ernährungsweise]
Nikolskiy, P., & Pitulko, V. (2013). "Evidence from the Yana Palaeolithic site, Arctic Siberia, yields clues to the riddle of mammoth hunting." Journal of Archaeological Science, 40(12), 4189–4197. [Aus Wollnashornhorn gefertigte Speerschleudern]
American Museum of Natural History. "Temperature and Relative Humidity." Agents of Deterioration, Preventive Conservation. [Empfohlene relative Luftfeuchte von 40–60 % und Grenzen kurzfristiger Schwankungen]
Florida Museum of Natural History, Vertebrate Paleontology Collection. "Preparation and Conservation." [Optimales Umfeld für subfossilen Knochen: 45–55 % relative Luftfeuchte bei etwa 18–22 °C; Risiken von Austrocknung und Schimmelbildung]